(перевод с английского)
Фотопродукты в ДНК, индуцированные солнечным светом
Спектры действия плоскоклеточной карциномы показывают, что ДНК является молекулой-мишенью; спектр поглощения ДНК хорошо коррелирует с летальностью, индукцией мутации и образованием фотопродуктов. 20- 24 Энергия , поглощенная ДНК производит молекулярные изменения, некоторые из которых включают одиночные базы, в результате чего другие взаимодействия между соседними и несмежных основаниями, а третьи между ДНК и белками. Относительные пропорции фотопродуктов ДНК будут варьироваться в УФ-спектре.
Димеризация между соседними пиримидинами - наиболее распространенные фотореакции, возникающие в результате прямого поглощения УФИ ДНК. Двумя основными фотопродуктами являются димер циклобутан-пиримидина (ЦПД) и, примерно на 25% частоты, фотопродукт [6-4] [(6-4) ПП] ( рис. 15.2 ). Распределение этих фотопродуктов в хроматине человека зависит от последовательности оснований, вторичной структуры ДНК и взаимодействий ДНК-белок. Поскольку цитозин более эффективно поглощает более длинные волны УФИ, чем тимин, CPD, содержащие это основание, легче образуются после облучения УФВ. 25 В сочетании с [6-4] PP, которые предпочтительно индуцируются тимин-цитозиновыми дипиримидинами, цитозиновые CPD могут играть главную роль в УФ-В (солнечном) мутагенезе. 26Последние данные показывают, что метилирование последовательностей PyrCG в гене p53 усиливает образование CPD в сайтах, которые являются горячими точками для мутаций. 27 PP может далее подвергаться UVB-зависимому превращению в его валентный фотоизомер, пиримидинон Дьюара 28 (см. Рис. 15.2 ). Помимо основных фотопродуктов, могут образовываться другие менее распространенные поражения, включая фотоаддукты пурин-пурин и пурин-пиримидин, фотогидратации и фотоокисления. 29 Поскольку общий выход этих фотопродуктов составляет всего 3-4% от выхода CPD, их биологическая роль считается минимальной; тем не менее, нельзя исключать их важность как премутагенные поражения на определенных участках.

Рисунок 15.2
Фотохимические реакции в дипиримидиновой последовательности ДНК, приводящие к образованию CPD (TpT1, TpT2) или [6-4] PP (TpT4) и его фотолитического производного, пиримидона Дьюара (TpT3). (Перерисовано из Тейлора и Корса).
UVA в первую очередь вызывает повреждение косвенно через высокореактивные химические промежуточные соединения, кислородные и гидроксильные радикалы, которые, в свою очередь, реагируют с ДНК с образованием повреждений оснований, разрывов цепей и перекрестных связей ДНК-белок. Важность этих фотопродуктов неизвестна, но накапливаются доказательства того, что УФА может быть важным патогенным компонентом солнечного света. Значительные уровни гибели клеток и индукции мутаций наблюдались в эпидермальных клетках человека после облучения УФА-светом. 20, 22 Эти данные согласуются с более ранними исследованиями, которые предполагали, что летальные эффекты UVA не опосредованы повреждением CPD, 30, 31 и что поглотители свободных радикалов могут снизить цитотоксичность. 32Биологическое значение УФА света, возможно, лучше всего иллюстрируется недавней демонстрацией того, что УФА вызывает значительный уровень онкогенеза у лысых мышей. 33
Генетические факторы канцерогенеза кожи
Удаление УФ фотопродуктов
Идея о том, что УФ-повреждение ДНК является важным компонентом фотоканцерогенеза, возникла после открытия того, что клетки пациентов, страдающих наследственным заболеванием XP, испытывают дефицит в репарации ДНК. 34 Со времени этих первоначальных исследований молекулярная основа XP и родственных заболеваний в значительной степени решена, а основной механизм и соответствующие гены клонированы и охарактеризованы. 7, 35
Два основных пути эксцизионной репарации - эксцизионная репарация нуклеотидов (NER) и эксцизионная репарация оснований (BER) - воздействуют на различные виды повреждений. Путь NER, который связан с XP, удаляет пиримидиновые CPD и крупные химические аддукты в ДНК и заменяет поврежденный сайт вновь синтезированным полинуклеотидным участком длиной примерно 29 оснований ( рис. 15.3 ). 36, 37Путь BER удаляет основания ДНК, которые подверглись относительно небольшой степени модификации, такой как фотогидратация или фотоокисление. BER включает удаление поврежденного основания гликозилазами с последующим действием апуриновых / апиримидиновых эндонуклеаз плюс другие ферменты и кофакторы. Патч может быть меньше, чем результат NER; один путь вставляет только от одного до двух оснований, а второй второстепенный путь вставляет более крупный участок, близкий по размеру к участку NER. И NER, и BER представляют собой сложные процессы с участием нескольких генных продуктов, которые по-разному взаимодействуют с поврежденными участками в зависимости от точной химической формы и местоположения повреждения. Смежные основания, конформация ДНК, связанные белки,36
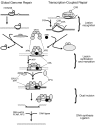
Рисунок 15.3
Биохимические этапы эксцизионной репарации нуклеотидов CPD в ДНК прокариот, показывающие биохимические детали событий, схематически представленных на рисунке 15.4. XPA связывается с фотопродуктами, и удаление происходит, когда УФ-специфические эндонуклеазы делают надрез
Эксцизионная репарация требует временной релаксации нуклеосомной структуры, так что поврежденные области становятся более доступными для экзогенных нуклеаз ( рис. 15.4 . Непрерывное удаление CPD и вставка оснований связано с очень низкой чистой частотой разрывов цепей ДНК, не более чем примерно 1 на 2 × 10 8 дальтон ДНК. Таким образом, только около 1% CPD, продуцируемых в ДНК дозой 10 Дж / м 2 , что представляет собой среднюю летальную дозу для клеток человека, подвергается иссечению в любой момент, но для восстановления одного поражения требуется всего около 4 минут. . Таким образом, эксцизия должна устанавливать динамический баланс между разрывом цепи и повторным соединением, и ее скорость ограничивается ферментами, участвующими в ранних стадиях репарации.

Рисунок 15.4.
Эвристическая схема эксцизионной репарации поврежденных участков ДНК в хроматине млекопитающих. Первый шаг включает механизмы, которые распознают повреждения и диссоциируют нуклеопротеины, чтобы сделать ДНК доступной для репарации ферментов. Далее следует последовательный разрез
Эксцизионная пластика - это неоднородный процесс. Между CPD и PP существует значительная разница в скорости их удаления из общего генома фибробластов и кожи грызунов и человека 38 даже несмотря на то, что основной механизм и размеры участков практически одинаковы. . 39 PP иссекаются быстрее, 50% удаляется из клеток человека и грызунов за 2-6 часов. CPD удаляются гораздо медленнее; половина удаляется из ДНК клетки человека в течение 12-24 часов, 40, 41но ничтожно малые количества удаляются из ДНК грызунов еще дольше. Частично удаление CPD может быть отложено из-за того, что сильное сродство системы вырезания к PP изначально блокирует доступные ферменты. Есть также большие различия в удалении CPD среди людей. Различная скорость иссечения может отражать тот факт, что PP значительно более искажают ДНК, и что они преимущественно расположены в межнуклеосомных областях ДНК, что может приводить к различиям в константе связывания между повреждениями - распознавание белков и ДНК. CPD распределены более хаотично, но с периодичностью 10Å в ДНК, обернутой вокруг нуклеосом, из-за предпочтения образования димеров на стороне ДНК, противоположной поверхности контакта ДНК-белок.

Рисунок 15.5.
Ремонт PP и CPD в коже мышей и культивируемых клетках. Радиоиммуноанализы, которые специфически обнаруживают PP ( A ) или CPD ( B ), использовались для мониторинга удаления этих повреждений из ДНК облученной кожи мыши (•) и мышиных клеток

Рисунок 15.6.
Ремонт [6-4] PP и CPD в человеческих фибробластах в культуре. Радиоиммуноанализы, которые специфически обнаруживают PP или CPD, использовались для мониторинга удаления повреждений из ДНК нормального (GM637) или ревертанта XP
Когда удаление рассматривается на основе отдельного гена, существуют дополнительные вариации в соответствии с транскрипционной активностью. И NER, и BER происходят как глобальная репарация генома (GGR) и репарация, связанная с транскрипцией (TCR). CPD быстрее вырезаются из активно транскрибируемых генов, особенно из цепи ДНК, используемой в качестве матрицы для транскрипции. 44 Повышенная скорость удаления активных генов может также происходить для PP, но это нелегко разрешить на фоне большей общей скорости удаления этих фотопродуктов в геноме в целом. Различие в удалении активных и неактивных генов происходит потому, что основной фактор транскрипции, TFIIH, играет главную роль в репарации. 45Этот фактор регулирует базальную транскрипцию РНК-полимеразой II. Большинство генов, регулирующих TCR, связаны с заболеваниями человека XP, CS и TTD. Две из геликаз в TFIIH соответствуют генам XPB и XPD , а другие, как известно, играют роль своих аналогов в дрожжевом транскрипционном факторе b. 46 BER также может преимущественно протекать при транскрипции генов и, по-видимому, находится под влиянием таких разнообразных генных продуктов, как XPG , 47, ген репарации ошибочного спаривания MLH2 , 48 и ген предрасположенности к раку груди BRCA1 . 49 Детальное исследование промотора и первых экзонов PGKIген показал, что вырезание происходит медленно в областях связывания промотора, но увеличивается сразу после сайта начала транскрипции ATG. 50
Мутагенность УФ фотопродуктов
Два молекулярных механизма в настоящее время считаются важными в инициации канцерогенеза: активация протоонкогенов и инактивация генов-супрессоров опухолей. Оба участка действия уязвимы для летальных и мутагенных эффектов УФИ. Ген, такой как протоонкоген ras , может быть активирован точечной мутацией; p53, с другой стороны, представляет собой опухолевый супрессор, обычно инактивируемый точечными мутациями в опухолях человека. 51- 52 прогрессирования опухоли также зависят от УФРА. Смерть клеток из-за летального воздействия УФ-света может усилить клональную экспансию выживших клеток, которые могли быть мутированы или инициированы, увеличивая вероятность прогрессирования опухоли. 52Таким образом, взаимодействие УФ-летальности и мутагенеза в клетках кожи человека может определять начало и прогрессирование УФ-канцерогенеза, и супрессор опухолей p53 играет главную роль в этом определении. 52
Мутагенность и онкогенность конкретного фотопродукта может в конечном итоге зависеть от его летальности. Поражение, которое блокирует полимеризацию ДНК, может быть связано с прекращением синтеза ДНК. 51 Хотя большинство фотопродуктов действуют как блоки для репликативных полимераз, α и δ, их можно обойти во время синтеза ДНК в разной степени, в зависимости от их структуры, с помощью специфичных к повреждению полимераз η и ζ. 35 Этот обход позволяет полимеразам считывать неинформативную информацию о последовательности: полимераза η предпочтительно вставляет аденин в формирующуюся цепь напротив поражения (так называемое «правило А») и, следовательно, может точно воспроизводить тимин-содержащий CPD, 53, 54, тогда как полимераза ζ мутагенный. 55Этот механизм имеет два важных значения, касающихся мутагенности различных фотопродуктов. Во-первых, мутации чаще всего возникают там, где цитозин является компонентом фотопродукта, поскольку вставка аденина напротив тимина является правильным и немутагенным событием. Следовательно, большинство CPD, поскольку они образуются между двумя основаниями тимина, не являются мутагенными. Во-вторых, чем более искажено поражение, тем больше вероятность, что оно заблокирует синтез ДНК и приведет к летальному исходу, а не к мутагенному событию. Поскольку ] PP значительно более деформирует, чем CPD (т. Е. Вызывает изгиб спирали на 47 °, а не на 7 °), он с большей вероятностью будет летальным, чем мутагенным. Поскольку обходное повреждение и введение аденина зависят от множества условий, как CPD, так и PP вносят сложный вклад в онкогенез.
Сайт-специфическое определение индукции фотопродуктов в гене lacI Escherichia coli предполагает корреляцию между горячими точками индукции PP и УФ-индуцированных мутаций. 56 Анализ сайтов индукции PP показал, что это поражение является ответственным за большую часть мутаций перехода цитозина в тимин в E. coli . В соответствии с этим наблюдением было показано, что исключительная индукция CPD ацетофеноном и УФ-светом не увеличивает индукцию переходных мутаций в фаге лямбда. 57 Подобная взаимосвязь наблюдалась при исследовании фотореактивации в E. coli; в то время как CPD и PP были одинаково цитотоксичными, последние были гораздо более мутагенными. 58
Роль определенных фотопродуктов в УФ-мутагенезе в клетках человека была исследована с использованием челночных векторов. В этих системах плазмиды на основе обезьяньего вируса, облученного ультрафиолетом (SV40), трансфицируются в клетки человека, где они реплицируются хозяином. Затем плазмиды выделяют, амплифицируют в бактериях и анализируют на предмет индукции мутации путем секвенирования ДНК. Затем сайты мутаций можно сравнить с сайтами индукции фотопродукта в целевой последовательности. Результаты этих исследований аналогичны результатам, полученным на E. coli : сайты переходных мутаций коррелируют с сайтами повышенной индукции PP ( таблица 15.1 ). В частности, сайты и частоты горячих точек мутаций в lacIгены, трансфицированные в клетки человека, были идентичны генам, определенным в E. coli . 59 В системе челночных векторов, в которой индукция фотопродукта и сайты мутации были исследованы в гене supF , трансфекция в SV40-трансформированные человеческие фибробласты и клетки почек обезьяны показала аналогичную корреляцию. 60 В гене supF , встроенном в хромосому L-клеток мыши 61 и в эндогенном гене APRT клеток CHO, 62 большинство мутаций состояло из переходов цитозин-тимин, происходящих в последовательностях тимин-цитозин и цитозин-цитозин. Из-за специфичности репарации цепи существует смещение между мутациями в кодирующей и некодирующей цепях экспрессируемых генов, которое различается в зависимости от способности клеток к NER. 63, 64
Таблица 15.1
UVC-индуцированные мутации, наблюдаемые в челночном векторе pZ189, реплицированном в XP или нормальных клетках человека а .
И CPD, и PP могут образовываться в последовательностях, которые, как было показано, являются горячими точками мутаций в челночных векторах, и идентичность мутагенного поражения была проверена фотореактивацией последовательности supF в плазмидах перед трансфекцией. 65, 66 Ферментативное фотореверсирование CPD снижает частоту мутаций в нормальных клетках на 75% и в клетках XP группы A на 90%. Поскольку котрансфекция обезьяньих клеток смесью необлученной плазмиды supF и облученной плазмиды без гена supF не вызывала мутаций, роль SOS-подобной системы, наблюдаемая в E. coli , по-видимому, не является ответственной за полученные результаты. 66 Эти результаты не согласуются с моделью, разработанной вE. coli и предполагают, что PP могут быть менее мутагенными в человеческих клетках. Аналогичный анализ с фотореактивацией показал, что CPD, встречающиеся в дипиримидиновых сайтах, содержащих по крайней мере одно цитозиновое основание, были преобладающими мутагенными повреждениями, индуцированными в клетках человека, и что [6-4] PP на этих сайтах составляли только около 10% мутаций. 65 Однако это же исследование показало, что частоты как CPD, так и [6-4] PP в отдельных сайтах дипиримидина не коррелировали с частотой мутаций, предполагая, что, хотя для мутагенеза необходимы УФ-индуцированные поражения, горячие точки мутаций определяются другими факторами. .
Однако сравнение выходов фотопродуктов, скорости репарации и мутаций в генах PGKI и p53 показало, что области с высоким уровнем УФ-индуцированных мутаций могут быть вызваны высоким выходом фотопродуктов и / или низким уровнем репарации. 50, 67- 69 Комбинации исходных урожайности и темпов ремонта , которые оставляют высокую чистую постоянную нагрузку фотопродуктов в конкретном месте , как представляется, непосредственно связана с мутационным выходом. Используя опосредованную лигированием полимеразную цепную реакцию (LMPCR), которая позволяет точно локализовать поврежденные основания, было картировано распределение фотопродуктов в экзонах 1 и 2 трех протоонкогенов ras , и не было корреляции между частотой фотопродуктов и индукцией мутации в кодоне 12 H - рас и К-ras был найден. 70 Дальнейшие исследования с LMPCR показали, что скорость эксцизионной репарации CPD на специфических нуклеотидах в промоторе и экзоне 1 гена PGK1 варьировала в 15 раз при значительном снижении репарации в сайтах связывания факторов транскрипции. 50 Восстановление ДНК отдельных нуклеотидов в гене-супрессоре опухоли p53 было сильно вариабельным и зависимым от последовательности, с медленным восстановлением, наблюдаемым в семи из восьми положений, связанных с мутациями. 67 УФ-индуцированные мутации в гене p53 являются вероятной ступенью в формировании плоскоклеточной карциномы 51, 52 и могут возникать в «холодных точках» репарации ДНК, а не в «горячих точках» фотопродуктов.
Генетические нарушения восстановления ДНК
Изучение заболеваний, чувствительных к солнечному свету, и отбор клеток хомяков и мышей, чувствительных к ультрафиолету, в культуре выявили большой ряд генетических локусов, которые контролируют реакцию кожи млекопитающих на повреждение ( таблица 15.2 ). Все эти локусы характеризуются значительным повышением чувствительности к УФ-излучению или УФ-В излучению и включают нарушения XP (8 групп комплементации), 7 CS (2 группы комплементации), 71, 72 TTD (3 различных фенотипических типа), 73, 74 и BCNS. . 75 Многие из этих генов также были определены в культурах клеток как ERCC1-12 (эксцизионная репарация перекрестного комплемента). 76
Таблица 15.2
Группы комплементации в XP и УФ-чувствительных клетках яичника китайского хомячка (CHO).
За исключением BCNS, все эти нарушения представляют собой повышенную чувствительность к длинам волн UVB и UVC из-за рецессивных мутаций, связанных с большим семейством генов, которые регулируют репарацию ДНК клеток человека. Эти нарушения не исключают друг друга, поскольку CS перекрывается с группами XP B, D и G, а TTD перекрывается с группами B и D. Расположение хромосом известно, и гены были клонированы для большинства этих локусов (см. Таблицу 15.2 ). Мутации в отдельных генах оказывают плейотропное действие на чувствительность клеток к ультрафиолетовому излучению и восстановление ДНК и связаны с рядом клинических синдромов, затрагивающих кожу, нервную систему и иммунологические изменения. BCNS, напротив, является доминантным заболеванием, включающим мутацию в супрессоре опухоли, который регулирует сигнальный каскад, включающий исправленный (PTC ) ген. 77
Механизм эксцизионного восстановления нуклеотидов
Пиримидиновые CPD и PP, продуцируемые в ДНК ультрафиолетовым или ультрафиолетовым излучением B, восстанавливаются с помощью сложного многоступенчатого процесса, включающего множество взаимодействующих генных продуктов. Отчасти именно потребность во взаимодействующих белках в процессе репарации приводит к возникновению сложных перекрывающихся симптомов у некоторых пациентов с мутациями в этих генах. Процесс репарации, в принципе, включает удаление олигонуклеотида из 27–29 нуклеотидов, содержащего фотопродукт, путем точно расположенных расщеплений 5 нуклеотидов на 3'-стороне фотопродукта и 24 нуклеотида на 5'-стороне. 78 После удаления этого олигонуклеотида образовавшаяся брешь заполняется ДНК-полимеразой δ, ядерным антигеном пролиферирующих клеток (PCNA) и одноцепочечным связывающим белком и лигазой. 36Эти процессы можно рассматривать как включающие последовательные этапы распознавания фотопродукта, сборки эксцизионного комплекса, смещения вырезанного фрагмента и полимеризации замещающего пластыря.
Распознавание фотопродуктов достигается за счет специфического связывания и ассоциации нескольких белков. Продукт гена XPA был первым идентифицированным белком распознавания повреждений и, по-видимому, ограничивает скорость восстановления в клетках человека. 79 Распознавание может происходить из-за искажений и одноцепочечной ДНК в фотопродуктах, или фотопродукты могут вылетать из спирали ДНК в карман в белке, как это происходит в некоторых других ферментах репарации ДНК. 80 XPC- hHR23B комплекс 81, 82 является самым ранним детектором повреждений , чтобы инициировать NER в нетранскрибируемой ДНК, действуя до белка РФА, и служит для стабилизации РФА связывания с поврежденным сайтом с высоким сродством к] PP. 83, 84 Белок XPC может потребоваться для временного разворачивания нуклеосом во время NER. 85 Этот комплекс специфически участвует в GGR, но не в TCR, где блокировка РНК-полимеразы II на поврежденном основании может функционировать на его месте. Стабильная ассоциация TFIIH с повреждениями ДНК зависит от целостности белков XPA и XPC. Помимо белков XPA и XPC, белок XPE имеет сходные характеристики связывания, но играет гораздо менее заметную роль. Две субъединицы, которые совместно очищаются, связаны с XPE: p48, который, как обнаружено, несет мутации от нескольких пациентов с XPE, и белок p125, и они могут участвовать в репарации менее доступных повреждений в нетранскрибируемой ДНК. 86 Субъединица p48 индуцируется в клетках человека и не экспрессируется в клетках хомяка, которые не могут восстанавливать CPD в нетранскрибируемой ДНК. Уровень мРНК p48 сильно зависит от базовой экспрессии p53 и может обеспечивать связь между p53 и NER. 87
NER действует скорее за счет сборки отдельных факторов в местах повреждения ДНК, чем за счет предварительной сборки голокомплексов. 88 Основные белковые факторы включают белок XPA, гетеротримерный белок репликации (RPA), субъединицу TFIIH с 6 по 9, комплекс XPC- hHR23B , нуклеазу XPG и нуклеазу ERCC1 -XPF. 36 После сборки комплекс XPC- hHR23B диссоциирует, и белок XPG отрезает 3 'от поражения и ERCC1-Гетеродимер -XPF отрезает 5 'от CPD. Комплекс нуклеазы плюс однонитевой фрагмент длиной 29–30 нуклеотидов высвобождается под действием фактора транскрипции TFIIH, который содержит как 3'-5 '(XPB), так и 5'-3' (XPD) геликазы. Белок XPG также необходим для TCR окислительного повреждения. 47 По крайней мере, один компонент TFIIH, XPB, взаимодействует с p53 и инициирует сигнальный каскад, ведущий к апоптозу в поврежденных клетках. 89 Для работы всего процесса NER требуется около 100 нуклеотидов ДНК. 78 PCNA, которая необходима для репарационного синтеза, также взаимодействует с GADD45, белком, индуцируемым повреждением, который стимулирует эксцизионную репарацию in vitro, хотя его функция in vivo неизвестна. 90 Многие компоненты всего механизма эксцизионной репарации являются продуктами генов, которые вызывают различные чувствительные к солнцу расстройства и нарушения развития. Некоторые компоненты эксцизионной репарации, особенно гены ERCC1 91, 92 и hHR23B 82 , не были обнаружены в группах дефектной эксцизионной репарации комплементации. Инактивация гена ERCC1 приводит к образованию чувствительных к УФ-излучению клеток и вызывает летальную печеночную недостаточность у мышей. 91 Сложность этих заболеваний проистекает не только из особого порядка, в котором генные продукты играют в репарации, но также из-за вторых ролей в факторах транскрипции и сигнальных каскадах.
Пигментная ксеродермия
XP - это редкое аутосомно-рецессивное заболевание, которое встречается в США с частотой 1: 250 000. 7Пораженные пациенты (гомозиготы) имеют чувствительность к солнцу, что приводит к прогрессирующим дегенеративным изменениям подверженных воздействию солнца участков кожи и глаз, часто приводящим к неоплазии. У некоторых пациентов XP, кроме того, прогрессирующая неврологическая дегенерация. Облигатные гетерозиготы (родители) обычно протекают бессимптомно. Средний возраст начала заболевания составляет от 1 до 2 лет, при этом кожа быстро приобретает вид, который наблюдается у людей, много лет находившихся на солнце. Пигментация неоднородна, на коже наблюдаются атрофия и телеангиэктазия с развитием базальноклеточного и плоскоклеточного рака. Частота онкологических заболеваний примерно в 2000 раз выше, чем у населения в возрасте до 20 лет, при этом продолжительность жизни сокращается примерно на 30 лет.
Клетки от пациентов с XP удаляют CPD пиримидина и [6-4] PP со сниженной скоростью от 0 до 90% от нормы, за исключением группы вариантов, которая имеет показатели, близкие к нормальным ( Таблица 15.3 ). Уменьшение иссечения коррелирует с низким уровнем репликации репарации. Снижение сходно во всех исследованных тканях, включая кожу in vivo, периферические лимфоциты, фибробласты, культуры клеток печени и опухолевые клетки. Среди пациентов с дефицитом эксцизионной репарации существует семь групп комплементации, а восьмая, вариант XP, имеет дефект репликации поврежденной ДНК (см. Таблицу 15.2 ).
Таблица 15.3
Характеристики репарации ДНК человеческих клеток.
Внутри этих заболеваний существует значительное генетическое разнообразие, и способность к эксцизионной репарации во многих случаях коррелирует со способностью выживать при УФ-облучении. По сравнению с нормальными клетками, клетки из XP групп A и D очень чувствительны к летальному воздействию ультрафиолетового света и неспособны исключить два основных типа ультрафиолетовых повреждений, CPD и [6-4] PP (см. Таблицу 15.3 ). . Клетки группы А XP также обладают пониженной способностью восстанавливать пиримидинон Дьюара, важное повреждение, индуцированное с повышенной эффективностью под действием УФ-В-света. 26, 38, 93 Клетки группы Е XP демонстрируют промежуточный фенотип как по своей чувствительности к УФ-излучению, так и по способности устранять УФ-повреждения, а ряд XPE-клеток лишен связывающего белка, специфичного к повреждению p48 / p125. 94
Группа C является одной из самых больших групп и часто упоминается как обычная или классическая форма XP. У пациентов наблюдаются только кожные заболевания, которые значительно различаются по степени тяжести в зависимости от климата. Опухоли языка наблюдались у нескольких пациентов. Клетки имеют низкие, но неоднородные уровни эксцизионной репарации (10–20% от нормы) и менее чувствительны к уничтожению УФ-светом и химическими канцерогенами, чем клетки в группах A и D. Одной из характеристик репарации, уникальной для этой группы, является то, что сниженная репарация не широко распространен в их геноме, например, в группах A и D, но ограничен определенными областями генома. 95 Эти клетки вставляют участки репарации в небольшие участки своего генома с нормальной скоростью, что, вероятно, соответствует репарации [6-4] PP и CPD 95и вырезать CPD тимина предпочтительно из транскрипционно активных областей. 95 Это ставит дилемму о том, что высокие уровни гибели клеток, соматических мутаций и рака из-за УФ-излучения в XP-группе C связаны с дефицитом репарации в нетранскрибируемых областях генома. Это, в свою очередь, предполагает, что активирующие, а не заглушающие мутации могут быть важны, или что мутации возникают из-за нерепарированных повреждений в нетранскрибируемой цепи активных генов.
Группа E - это редкая группа, которая проявляет легкие симптомы и остаточные уровни восстановления, которые составляют от 50 до 100% от нормы. Некоторые клетки XPE не имеют ДНК-связывающего белка 94 и, соответственно, несут мутации в гене p48, но это наблюдается не во всех случаях, что повышает вероятность того, что не все клетки, классифицированные в группе E, правильно отнесены. Роль этого белка все еще неясна, но он зависит от р53 и участвует в репарации нетранскрибируемых участков ДНК. 86, 87
Клетки варианта XP не имеют дефекта эксцизионной репарации, но кажутся близкими к нормальным по своей способности вырезать повреждения ДНК (см. Таблицу 15.3 ), но демонстрируют небольшую, но значительную чувствительность к ультрафиолетовому свету. Теперь известно, что в этой группе комплементации отсутствует ДНК-полимераза, HRAD30 (полимераза η), которая необходима для точной репликации димеров пиримидина. 96, 97В его отсутствие клетки варианта XP очень восприимчивы к УФ-индуцированному мутагенезу и связаны по существу с теми же симптомами, что и другие пациенты XP. Канцерогенез в результате УФ-повреждения у пациентов с XP возникает, следовательно, из-за потери либо способности NER, либо полимеразы η; оба приводят к увеличению количества повреждений ДНК, которые становятся субстратом для генерации ошибок (таких как мутации, перестройки генов и делеции) полимеразой ζ.
Синдром Кокейна
CS - аутосомно-рецессивное заболевание, характеризующееся кахектической карликовостью, аномалиями сетчатки, микроцефалией, глухотой, нервными дефектами и задержкой роста и развития после рождения. Карциномы кожи в результате гиперфоточувствительности не наблюдаются у пациентов с CS, что отличает это заболевание от XP.
Пациенты с CS распределены неравномерно в группах комплементации: в группе A значительно больше пациентов, чем в группе B. 71 Из группы B дополнения XP известны три пациента из двух семей, у которых также проявляются симптомы CS. 98 симптомов CS также были зарегистрированы у нескольких пациентов с XPD и XPG. Чувствительность к УФ-излучению большинства клеток CS находится в узком диапазоне, с D 37 примерно наполовину от нормы, в отличие от клеток XP, которые демонстрируют широкий диапазон чувствительности. Характерные клеточные изменения CS включают неспособность синтеза ДНК и РНК вернуться к нормальным уровням после УФ-облучения. 72 Удаление фотопродуктов ДНК из тотальной геномной ДНК клеток CS является нормальным явлением, но восстановление транскрипционно активных генов снижено. 99 Продукты гена CS участвуют в сопряжении эксцизионной репарации с транскрипцией, но их точная функция еще не ясна. Они могут быть вовлечены в убиквитинирование и деградацию застопорившейся РНК polII на поврежденных участках.
Таким образом, синдром Кокейна и группа C XP составляют интересный контраст. Клетки CS восстанавливают только транскрипционно неактивные гены, тогда как клетки XP группы C восстанавливают только транскрипционно активные гены. Они демонстрируют аналогичную повышенную чувствительность к уничтожению клеток, указывая на то, что все области генома должны быть восстановлены для нормального выживания. Но только XP группа C демонстрирует повышенный мутагенез и канцерогенез, что указывает на то, что дефектная репарация транскрипционно неактивных генов более важна для этих конечных точек.
Трихотиодистрофия
TTD - редкое аутосомно-рецессивное заболевание, характеризующееся хрупкостью волос с дефицитом серы и ихтиозом. Стержни волос продольно расщепляются на мелкие волокна, и эта ломкость связана с уровнями цистеина / цистина в белках волос, которые составляют от 15 до 50% от таковых у нормальных людей. Состояние также сопровождается задержкой физического и умственного развития различной степени тяжести. Пациенты часто имеют необычный внешний вид лица с выступающими ушами и опущенным подбородком. Умственные способности варьируются от низко-нормальных до тяжелой отсталости. 73 На основе клеточных реакций на УФ-повреждение можно выделить три категории заболевания. Наиболее серьезные из них имеют дефекты ремонта и дополняющие свойства, которые помещают их в группу D по опыту; в промежуточных случаях наблюдается пониженная репарация ДНК, но нормальная чувствительность к ультрафиолету; а третий по УФ-ответу неотличим от нормальных клеток. 74
Были охарактеризованы профили восстановления трех линий фибробластов, полученных от пациентов с TTD; каждый демонстрирует уникальный фенотип. 74 Одна линия клеток TTD показывает нормальную устойчивость к ультрафиолету и способность к репарации ДНК; другой показывает ответ XP группы D на УФ-облучение со значительным снижением выживаемости и репарации и связан с мутациями в гене XPD; 100 клетки, полученные от третьего пациента, показывают нормальную выживаемость после УФ-облучения, но способность к восстановлению, о чем свидетельствует синтез восстановления и ремонтный разрез, значительно снижается. Хотя скорость иссечения [6-4] PP в этом третьем классе TTD немного снижена, восстановление CPD кажется нормальным, что позволяет предположить, что либо PP не является летальным для этих клеток, либо наблюдаемый дефект в его репарации проявляется. недостаточно, чтобы повлиять на выживание. Конкретные гены TTD (A, B) могут быть компонентами фактора транскрипции TFIIH, 46 и симптомы этого заболевания указывают на роль этого фактора в развитии и росте волос.
Синдром базально-клеточного невуса и базально-клеточный рак
BCNS - аутосомно-доминантное заболевание с высокой пенетрантностью (> 97%). Основными проявлениями этого синдрома являются множественные опухоли (в среднем от 50 до 100), в основном на коже, подвергающейся воздействию солнечных лучей, которые обычно появляются в период полового созревания, а также во втором и третьем десятилетии жизни. 75 Другие симптомы включают ямки на ладонях и подошвах, а также аномалии опорно-двигательного аппарата (сколиоз, раздвоение ребер, расщепление позвоночника). Высокая частота аномалий развития предполагает, что нормальный аллель гена BCNS может играть роль в росте и развитии, помимо ускорения канцерогенеза, вызванного солнечным светом. Ген, связанный с BCNS, был идентифицирован как ген, ранее идентифицированный у Drosophila как патчированный ген ( PTC ). 77 Мутации вPTC были идентифицированы при спорадических базальных клетках рака (BCC) и у пациентов с BCNS, а также с повышенной частотой в BCC у пациентов XP. 101
Наиболее частым грубым генетическим изменением при спорадических BCC (68%) является потеря гетерозиготности (LOH) в локусе PTC на хромосоме 9q22. 102 Это происходит даже в небольших BCC (<1 см в диаметре), во время их начального развития из стволовых клеток волосяных фолликулов, предполагая, что LOH в локусе PTC может быть ранним событием в онкогенезе BCC. 102 BCNS-ассоциированные BCCs сохраняют мутантный аллель PTC зародышевой линии, но теряют аллель дикого типа (WT) из-за потери больших хромосомных фрагментов на 9q (Bonifas et al, 1994) или из-за точечной мутации. В соответствии с гипотезой о двух ударах Кнудсона, у пациентов с BCNS развивается больше BCC, от десятков до сотен и в более молодом среднем возрасте, чем в большинстве спорадических случаев.
Ген PTC человека кодирует мембранный белок из 1296 аминокислот, который, как предполагается, имеет 12 трансмембранных доменов, которые регулируют клеточную пролиферацию и путь передачи сигнала. Белок PTC подавляет экспрессию гена hedgehog (HH), взаимодействуя с семи трансмембранным белком, напоминающим рецепторный белок, связанный с G-белком (Smoothened, SMO). PTC- ингибирование SMO снимается связыванием PTC с SHH или последующей мутационной инактивацией PTC . 77 Передача сигналов SMO может активировать транскрипцию мишеней HH, включая PTC, через сигнальный путь, ведущий к активации фактора транскрипции, Gli. Таким образом, как это ни парадоксально, мутационная инактивация PTC и, как следствие, потеря активности белка PTC приводит к увеличениюЭкспрессия PTC и накопление высоких уровней транскрипта PTC .
Развитие других опухолей в BCNS, включая медуллобластому и фибромы яичников и матки, предполагает, что BCNS соответствует модели двух мутаций Кнудсона для канцерогенеза. 75 Однако количество таких мутаций, необходимых для индукции рака у людей с BCNS, неизвестно и может быть больше двух. Тем не менее, в BCNS одна из мутаций наследуется как аутосомно-доминантный ген во всех соматических клетках, тогда как факторы окружающей среды, такие как УФ или ионизирующее излучение, могут вызывать оставшуюся мутацию (и). Эта гипотеза подтверждается наблюдением, что у несимптомных детей с BCNS, получавших лучевую терапию по поводу медуллобластомы, развились множест